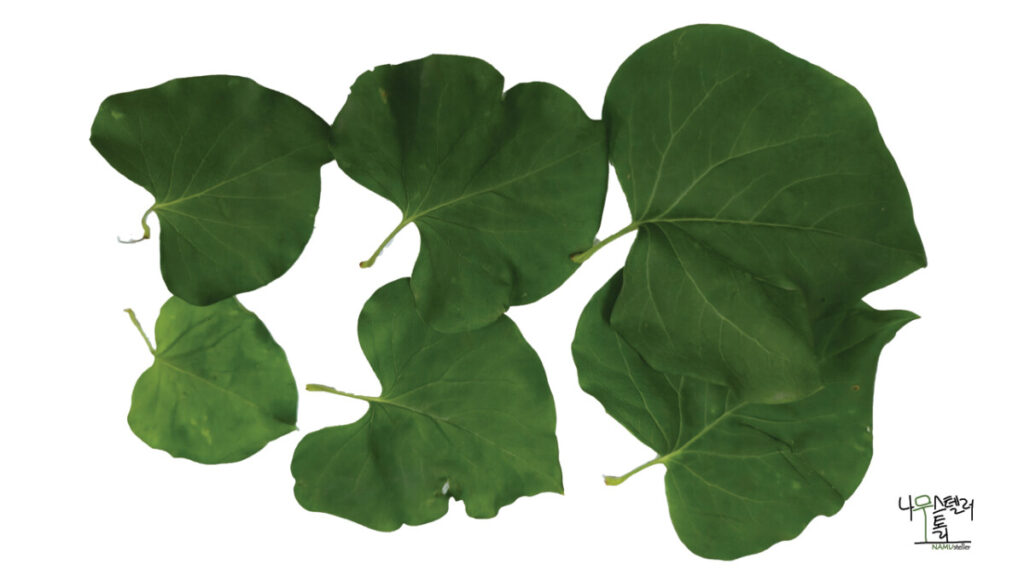
아침 햇살 속, 눈이 부셔 피한 그늘 머리 위로 오동나무 잎사귀 뒷면이 투명하고 맑은 연녹색으로 빛났다. 이어 눈에 들어온 나무 한 줄기, 마주나기(대생)로 나온 하트 모양의 잎이 바깥쪽에서 볕을 받는 잎은 크고, 안쪽 그늘에 있던 잎은 작았다. 작은 잎의 크기는 큰 잎의 절반에도 미치지 못했다. 그런데 모양은 대체로 닮아있다. 심장을 닮은 윤곽, 갈라져 뻗은 잎맥이 크기는 달라도 되풀이되고 있었다. 같은 줄기, 같은 유전자에서 나온 잎들이다. 잎은 어디에서 ‘이만큼’을 정했을까. 크기를 재는 장치라는 것이 있기는 한 걸까.
세포를 찍어내다.
잎은 줄기 끝 생장점 가장자리, 옥신이 모인 작은 돌기에서 시작한다. 이 돌기는 계속 쪼개져 세포 수를 늘린다. 잎의 앞면과 뒷면, 밑동과 끝, 중앙과 가장자리라는 축도 이때 세워진다. 잎의 모양이 그려지는 것이 아니라 ‘어디가 어느 쪽으로 더 빨리 자랄 것인가’라는 방향성을 가진 규칙이 있을 뿐이다.
꺼지는 경계선
잎이 조금 자라면 가장 오래된 부분인 끝의 세포들이 먼저 분열을 멈추고 물을 흡수하여 커진다. 잎에는 두 구역이 생긴다. 끝 쪽은 분열을 멈추고 부푸는 구역이고, 밑동 쪽은 아직 세포가 쪼개지는 구역이다. 이 두 구역 사이의 경계선이 밑동 쪽으로 천천히 내려온다. 전등이 켜져 있는 분열하는 쪽과 꺼진 분열을 멈춘 쪽의 경계선(CIN-TCP 유전자가 관여한다고 제시됨)이 천천히 밑동 쪽으로 이동하는 그림이다. 그러나 이 경계선을 실제로 움직이는 힘이 무엇인지 다 밝혀지지 않았다.
경계선이 닿은 자리
경계선이 밑동에 닿으면 잎의 세포 수가 확정된다. 그 뒤로는 새 세포가 생기지 않고, 세포가 물을 머금어 부풀며 잎이 최종 크기에 이른다. 다른 조건이 같다면 경계선이 일찍 내려오면 세포 수가 적은 작은 잎이 되고, 늦게 내려오면 큰 잎이 된다. 경계선이 내려오는 속도와 방향의 차이가 모양에 영향을 준다.
오동나무 잎의 경계선
오동나무 잎에도 경계선이 지나갔을 것이다. 바깥 잎과 안쪽 잎은 각자 경계선이 닿은 자리에서 멈췄다. 안쪽 잎에서 경계선이 더 일찍 내려왔는지, 분열이 끝난 뒤 세포가 덜 부풀었는지 알 수는 없다. 그늘에서는 광합성으로 얻을 당이 적어 세포를 만들고 부풀릴 재료가 모자랄 수도 있고, 그늘이라는 조건 자체가 성장을 누르는 신호로 작용했을 수도 있다. 두 잎이 태어난 시기와 마디의 위치가 달랐을 가능성도 있다. 빛 때문이라고 짐작할 뿐, 빛만의 탓이라고 단정할 수도 없다.
종마다 고유한 잎 크기가 있다는 것은 분명하다. 그렇다면 목표 크기가 있다는 뜻 아닐까. 그러나 유전자가 정하는 것은 하나의 값이 아니라 조건에 따라 움직이는 범위로 보는 편이 관찰과 잘 맞는다. 오동나무의 두 잎은 그 범위 안의 서로 다른 두 점일 수 있다.
메워지지 않는 자리
빛이라는 환경이 아니라 유전자를 일부러 손상해 분열을 줄인 돌연변이 실험이 있다. 애기장대 돌연변이 잎은 세포 수가 야생형의 30%로 줄고 세포 크기가 약 150% 정도 커진다고 보고되었고, 자엽은 세포가 약 60% 적은 대신 약 1.8배 크다고 한다. 즉, 세포가 부족해지면 그만큼 부푸는 것처럼 보인다. 이 현상을 보상이라고 해보자. 그런데 계산치(임의로 계산한 근사치)로 보면 야생형의 45% 안팎, 자엽은 70% 안팎이다. 즉 셈으로는 맞아떨어지지 않는다. 세포는 부풀어도 잃은 세포 수를 다 메우지는 못한다. 만약 목표 크기를 알고 있다면 보상은 목표에 접근해야 한다. 그런데 어긋난 사실이 오히려 그런 목표가 없다는 쪽을 가리킨다.
누가 스위치를 내리는가.
전등이 차례로 꺼지는 것은 볼 수 있어도 스위치를 내리는 손은 어디에도 없듯, 보상이라는 말에도 부족분을 메우는 누군가를 전제해야 하지만 그 누군가는 없다. 세포 수가 줄었다는 정보가 이웃 세포에 전해지는지, 전해진다면 그 신호가 세포 수를 센 것인지, 분열을 멈추는 시간표와 부푸는 시간표가 어디서 만나는지 우리는 아직 모른다. 알게 된다 해도 그것이 크기를 정하는 목표는 아닐 것 같다.
#오동나무 한 줄기의 잎들