베어낸 그루터기를 보면 습관적으로 연륜을 세게 된다. 중심 근처의 고리는 넓고, 가장자리로 갈수록 좁아져 마지막 고리는 얇은 선이 붙어 있는 듯하다. 처음, 이 단면을 보았을 때 그것을 나무의 쇠락으로 읽었다. 나무가 해마다 힘이 빠져 덜 자란 것이라고, 그렇게 생각한 것이 틀렸다는 것을 아는 데는 오래 걸리지 않았지만, 이해는 좀 더 시간이 필요했다.
살아있는 것은 가장자리뿐
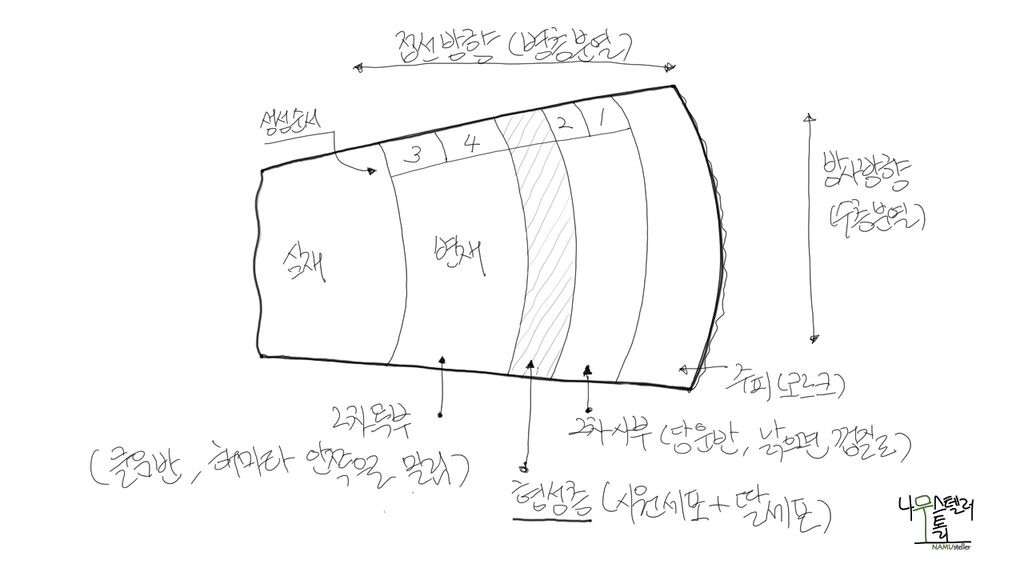
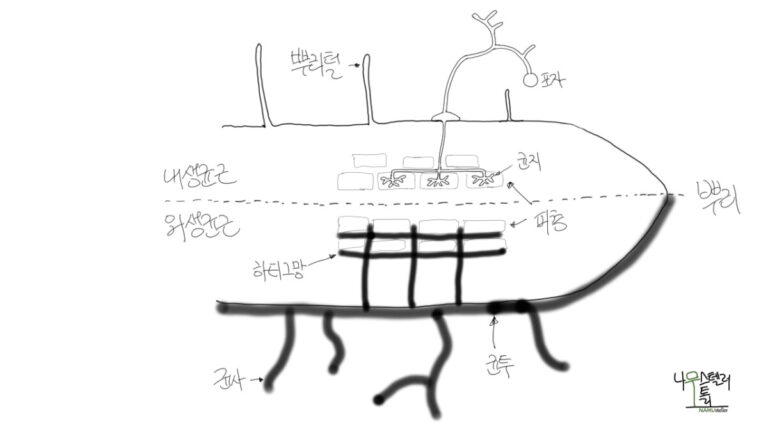
줄기를 자르면 심재 대부분은 이미 죽은 세포의 벽이다. 도관은 속을 비운 뒤 물을 나르는 통로가 되고, 그 바깥 사부와 목부 사이에 형성층이 있다. 나무가 굵어지는 것은, 이 얇은 띠 안에서 일어난다.
형성층은 한 겹의 세포가 아니라, 분열 능력을 유지하는 시원세포와 막 갈라져 나온 딸세포들이 만든 띠다. 그 폭은 생각보다 얇다. 한 해에 쌓이는 굵기는 이 몇 겹의 세포가 누적된 것이다.
한 방향으로의 병층분열
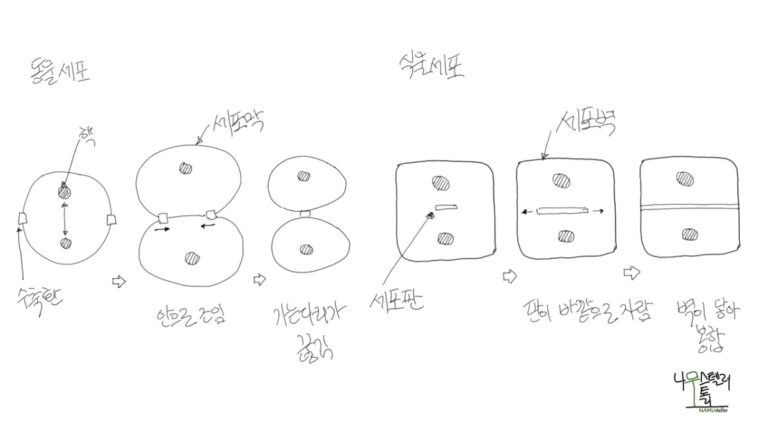
시원세포는 줄기 표면과 나란한 면(접선)으로 갈라진다. 이를 병층분열이라 한다. 딸세포 둘 가운데 하나는 시원세포로 남고, 다른 하나는 유도 세포가 되어 안쪽이나 바깥쪽으로 밀려난다. 이 한 번의 분열은 한 방향만 정한다. 안쪽으로 간 세포는 목부가 되어 벽을 두껍게 쌓고 속을 비우며 죽고, 바깥쪽으로 간 세포는 사부가 되어 살아 있는 채로 당을 나르는 체관이 된다.
봄에는 많은 나무가 바깥쪽, 즉 사부 쪽부터 먼저 시작된다고 한다. 그러다 분열의 방향이 안쪽으로 향하고 여름까지 목부가 쌓인다. 물론 종과 해마다 다르다. 한 해가 끝나면 안쪽이 압도적으로 많다. 우리가 심재가 부르는 부분이다.
목부가 한 겹이 쌓일 때마다 형성층은 바깥으로 한 칸 밀려난다. 그래서 형성층은 늘 목재의 가장 바깥면에 자리한다. 자기가 만든 것은 자기보다 안쪽에 남고, 자신은 매번 가장자리로 밀려난다.
둘레를 메우는 수층분열
병층분열로 반지름이 커지면 둘레가 커져야 하는데, 병층분열만으로는 시원세포의 수가 그대로다. 그럼 늘어난 둘레에 틈이 생기고, 이를 다른 분열이 메운다. 길쭉한 방추형 시원세포가 비스듬한 벽으로 갈라져 둘레 방향으로 나란히 놓인다. 두 딸세포는 곧 끝을 늘려 이웃 세포 사이로 밀고 들어가 원래의 길이를 되찾는다. 이 분열은 드물게 일어난다. 먼저 두께가 쌓이고, 그 결과로 둘레가 모자라면 수가 보충된다. 그렇게 각각이 세포가 재 위치에서 분열하고 그 합이 고리를 이어 붙인다. 바깥의 껍질도 같다. 늘어난 둘레를 따라가지 못한 껍질은 갈라지고, 그 안쪽에서 코르크형성층이 새 껍질을 만든다. 나무껍질의 갈라진 무늬는 이 찢김이 남기 흔적이다.
고리가 만든 기록
온대의 나무는 봄에 큰 도관세포를, 늦여름부터는 작고 두꺼운 세포를 만든다. 이 차이가 고리의 경계로 보인다. 열대에서는 기온 대신 건기가 겨울 구실을 한다. 건기가 뚜렷한 곳에서는 고리가 선명하고, 일 년 내내 습한 곳에서는 흐려진다. 즉 고리가 기록한 것은 ‘한 해’라기 보다 ‘멈춤이 있었던 자리’다.
고리의 폭과 면적
여기서 짚고 넘어가야 하는 것이 고리의 폭과 면적의 관계이다. 조금만 추론하면 나무가 매년 같은 양의 목재를 만들었다고 가정하고 같은 면적을 더 커진 둘레에 펼치려면 고리는 더 얇아질 수밖에 없다. 그래서 연륜의 폭에서 크기 효과는 먼저 걷어내야 한다. 면적으로 환산하면 어린나무에서는 대체로 늘다가 중간 크기에서 최대가 되는 경우가 일반적이다. 그러니 나이 든 나무의 좁은 고리는 쇠락의 증거라기보다는 같은 일을 더 큰 원 위에서 한 흔적일 수 있다. 반대로 실제로 쇠락의 경우도 있을 것이다. 어느 쪽이든 고리의 폭이 아니라 면적으로 보아야 알 수 있고, 면적을 보아도 늘 분명한 것은 아니다.
멈추지 않는 한계
형성층은 스스로 멈추는 장치가 없다. 정단분열조직과 마찬가지로, 구조만 보면 살아 있는 한 계속 분열할 수 있다. 그런데 나무는 굵어지다가 어느 순간 멈춘다.
수고에는 비교적 분명한 한계가 있다, 높아질수록 물을 잎까지 끌어올리기 어려워지고, 꼭대기의 잎은 수분 부족으로 광합성을 줄인다. 직경의 한계는 이보다 복합적이다. 굵기를 막는 구조는 별도로 없으니, 상한은 다른 데서 정한다. 광합성량 자체는 나무가 커지면 잎이 함께 늘 수 있다. 문제는 번 만큼 쓰이는 몫(살아있는 조직이 커질수록 호흡으로 쓰는 양도 커짐)도 늘어난다는 점이다. 즉 번 탄소에서 쓰는 탄소를 뺀 수지, 자기 무게와 바람을 견디는 일과 같은 물리적 한계로 형성층은 끝내 멈추지 않은 채로 멈춰진다.
‘한계’라는 말은 나무 안 어딘가에 선이 그어져 있는 것처럼 들린다. 그러나 그 선은 나무 안 어디에도 있지 않다. 탄소 수지, 바람, 이웃, 균, 그 사이 어디쯤 있다. 이것을 나무의 한계라고 불러야 하는가, 조건의 한계라고 불러야 하는가.