나무의 출현에 대한 초기 글에서 시아노박테리아가 진핵세포의 엽록체가 되었던 사건에 대해 말하면서 어느 순간 빠진 부분이 보였다. 식물세포와 동물세포의 근본적인 차이, 세포벽이다. 세포벽은 식물세포의 고착성과 무한 생장, 모듈화 구조, 생식-체세포 미분리, 식물의 방어 전략까지 줄줄이 끌고 가는 핵심 제약이다. 그러니 그것이 어떻게 시작되었는지, 어떤 경로로 지금의 자리에 와 있는지 확인해야 했다.
처음의 시나리오
처음에 내가 상상한 시나리오는 이랬다. 광합성을 시작해 스스로 에너지를 만들게 되니 더는 움직일 필요가 없어졌고, 그래서 차츰 세포벽을 두르게 되었고, 그렇게 식물이 되고 나무가 되었다는, 꽤 그럴듯한 이야기. 확인해 보니 사정은 달랐다.
눌러앉은 시아노박테리아
약 10억 년 전후, 광합성을 하지 못하던 한 단세포 진핵세포가 시아노박테리아 한 마리를 우연히 삼켰다. 소화되는 대신 그 안에 눌러앉은 시아노박테리아는 이후 엽록체가 된다. 오늘날 식물이 광합성을 할 수 있는 건 이 사건, 즉 1차 내부 공생 덕분이다.
이 공생을 ‘광합성 능력을 통째로 넘겨받았다’라고 이해하면 간단한데, 사실 삼켜진 건 이 능력 하나가 아니라 생물 전체였다. 박테리아가 자기 몸을 위해 가진 살림살이 전체, 즉 유전자, 대사경로, 세포막 수송 단백질 같은 것들이다. 실제로 한 개체의 유전체 전체가 함께 들어온 사건이었다.
이후 오랜 세월에 걸쳐 시아노박테리아 유전체 대부분은 조금씩 숙주의 핵으로 이관되거나 사라졌다. ‘내부 공생 유전자 전달’이라 부르는 과정이다. 오늘날 식물의 핵에는 시아노박테리아에서 건너온 유전자가 수천 개 남아 있고, 그중 상당수는 광합성과 상관없는 것들이다. 통째로 딸려 왔기 때문이다.
바뀐 용도
그 안에 셀룰로스를 만드는 유전자가 있었던 것으로 보인다. 박테리아는 자기만의 세포벽(펩티도글리칸)을 갖고 있다. 시아노박테리아도 마찬가지다. 가장 유력한 설명에 따르면 식물의 셀룰로스 합성효소 유전자를 시아노박테리아의 것과 나란히 놓고 비교하면, 둘은 가장 가까운 친척 관계이고, 그 유사성의 패턴이 엽록체와 시아노박테리아의 리보솜 RNA 사이에서 나타나는 관계와 비슷했다.
이 설명이 맞다면, 광합성 유전자와 세포벽 유전자가 어떤 기능적 관계로 짝지어 선택된 것이 아니라, 그저 한 박테리아에 둘 다 들어 있었던 것이고, 통째로 한 번에 삼켜지는 사건이 일어났을 뿐이다.
원래 시아노박테리아는 이 유전자를 자기 자신을 감싸는 피복층을 만드는 데 사용했다. 그런데 내부 공생 이후, 이 유전자는 그 일을 하지 않았다. 대신, 숙주 세포 자신의 원형질막 바깥에, 완전히 새로운 벽을 짓는 데 동원된다. 용도가 바뀐 것이다. 진화생물학은 이런 재활용을 ‘신기능화’라 부른다.
시작은 우연, 유지는 선택
돌이켜보면 모든 사건에 목적이라 부를 만한 것이 없었다. 광합성은 필요해서가 아니라 시아노박테리아가 삼켜지고 살아남은 우연이었던 것이고, 벽을 짓는 유전자도 유용해서 골라 담은 게 아니라, 같은 상자 안에 있었을 뿐이다. 그 유전자가 숙주의 몸을 감싸는 데 쓰이게 된 것도, 미리 계획했던 것은 아니다. 시작은 우연이었으나 유지는 선택이었다,
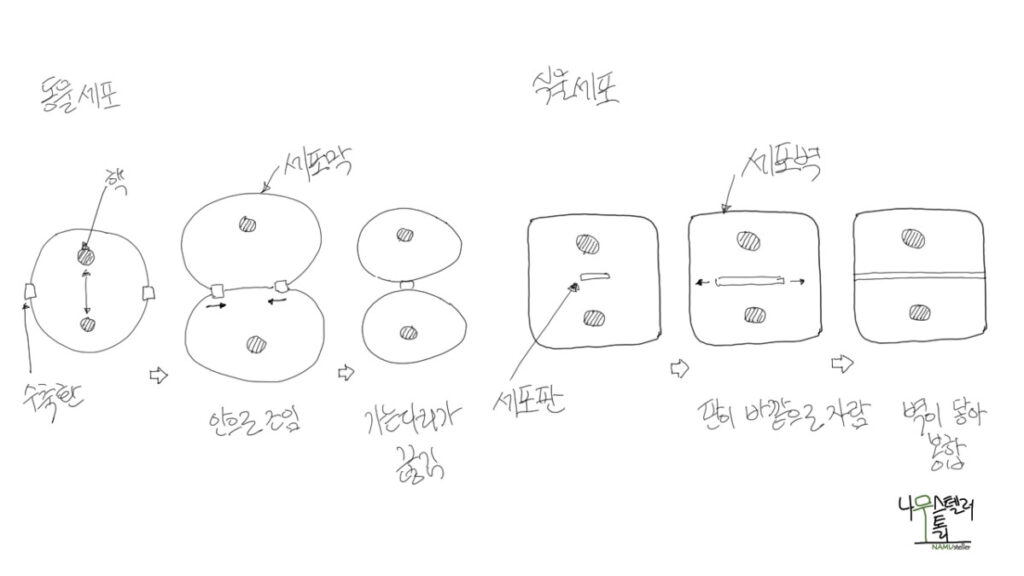
오늘도 창밖 나무의 형성층과 정단분열조직의 세포는 자신의 핵분열 뒤 세포 중심부에 세포판을 세우고 있다. 이 판이 중심에서 바깥쪽으로 자라나 기존 벽에 가서 닿고 봉합되면, 그 위에 셀룰로스가 더해지면서 두 개의 움직일 수 없는 세포가 되고 있다.